自然科学研究機構 基礎生物学研究所
お茶の水女子大学
京都府立大学
名古屋大学
細胞のなかでは多数のシグナル伝達経路が互いにやり取りしながら生命活動を制御しています。しかし、異なる種類の低分子量GTPase
*1 が植物で連携してはたらくのか、はたらくとすると、いつどのようにはたらくのかはわかっていませんでした。
今回、基礎生物学研究所の伊藤瑛海准教授、上田貴志教授を中心とする研究グループは、お茶の水女子大学 Natalia J. Rzepecka特任リサーチフェロー、伊藤容子講師、植村知博教授、京都府立大学 平野朋子准教授、佐藤雅彦教授、埼玉大学 海老根一生准教授、名古屋大学 小田祥久教授、理化学研究所光量子工学研究センター 中野明彦副センター長(研究当時/現 東京科学大学)と連携し、モデル植物シロイヌナズナを用いた解析により、REAP1/SWAP70というタンパク質が異なる種類の低分子量GTPaseであるRAB5とROP7をつなぐ役割を果たすことを明らかにしました(図1)。RAB5は細胞内で物質を運ぶ「膜交通」を制御し、一方で、ROP7が属する植物特有のROPグループ
*2は細胞の形づくりなどを制御します。さらに、こうした異なる役割をもつ低分子量GTPaseをREAP1がつなぐことで形成される分子ネットワークが、正常な花粉形成に不可欠であることを発見しました。
これは、植物が進化の過程で独自に築いた低分子量GTPaseネットワークの存在を示唆する成果です。本論文は2026年9月17日付で英国国際学術誌『Nature Plants』に掲載されます。
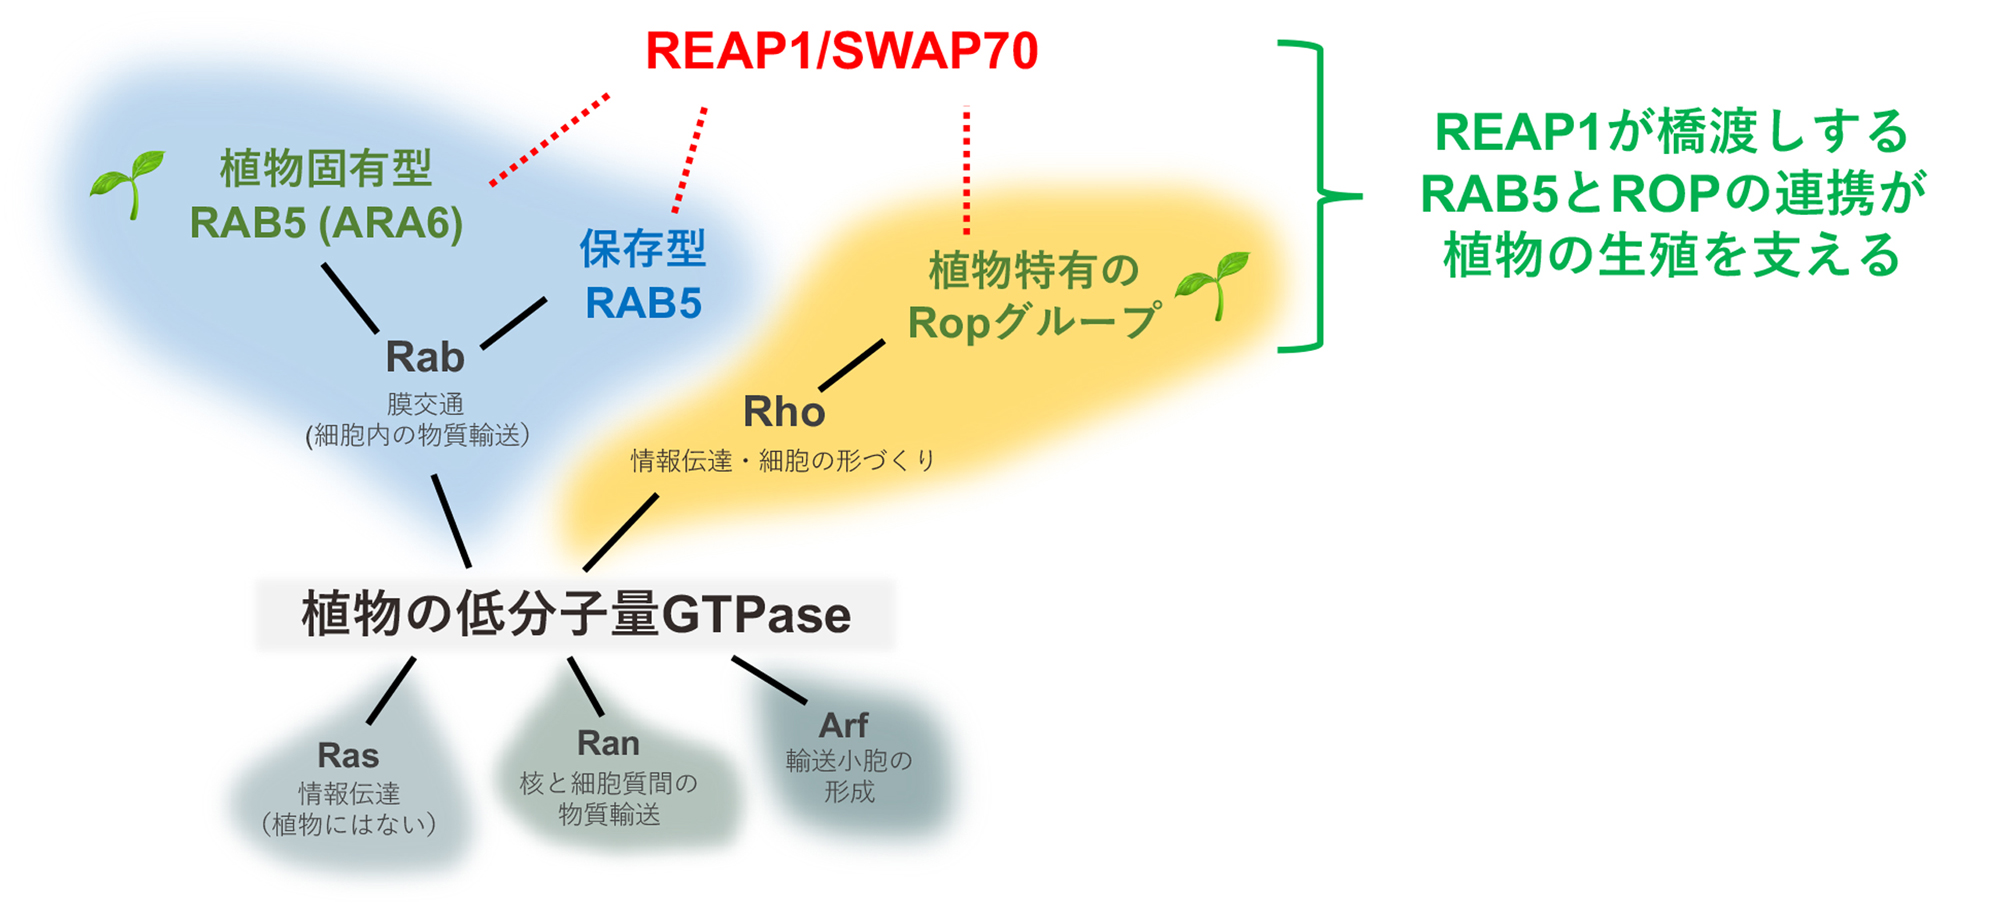
図1: 本研究で明らかになった植物の低分子量GTPaseのクロストーク
【研究の背景】
低分子量GTPaseは、細胞内で情報を伝える「分子スイッチ」としてはたらき、細胞内輸送や細胞の形づくりなど、さまざまな生命現象を制御しています。動物細胞では、異なる種類の低分子量GTPaseが互いに連携しながらはたらく「クロストーク」が知られています。
一方で、植物では進化の過程で低分子量GTPaseが独自の多様化を遂げ、植物特有のRAB5であるARA6や植物に特有のROPグループなどが生まれました。これらは植物に特有のさまざまな生命現象を制御していますが、互いに連携してはたらくのか、それとも独立して機能するのかはわかっていませんでした。
【研究の成果】
本研究では、シロイヌナズナを用いてRAB5と結合する新規タンパク質であるREAP1を発見しました。REAP1は、細胞内輸送(膜交通)の中継地点であるエンドソーム
*3 に局在し、植物特有のRAB5メンバーであるARA6だけでなく、動物や酵母にも存在する保存型RAB5とも結合することがわかりました。さらに、REAP1がエンドソームに局在するためには、RAB5メンバーとの結合に加えて、特定の膜脂質との結合も重要であることがわかりました(図2)。
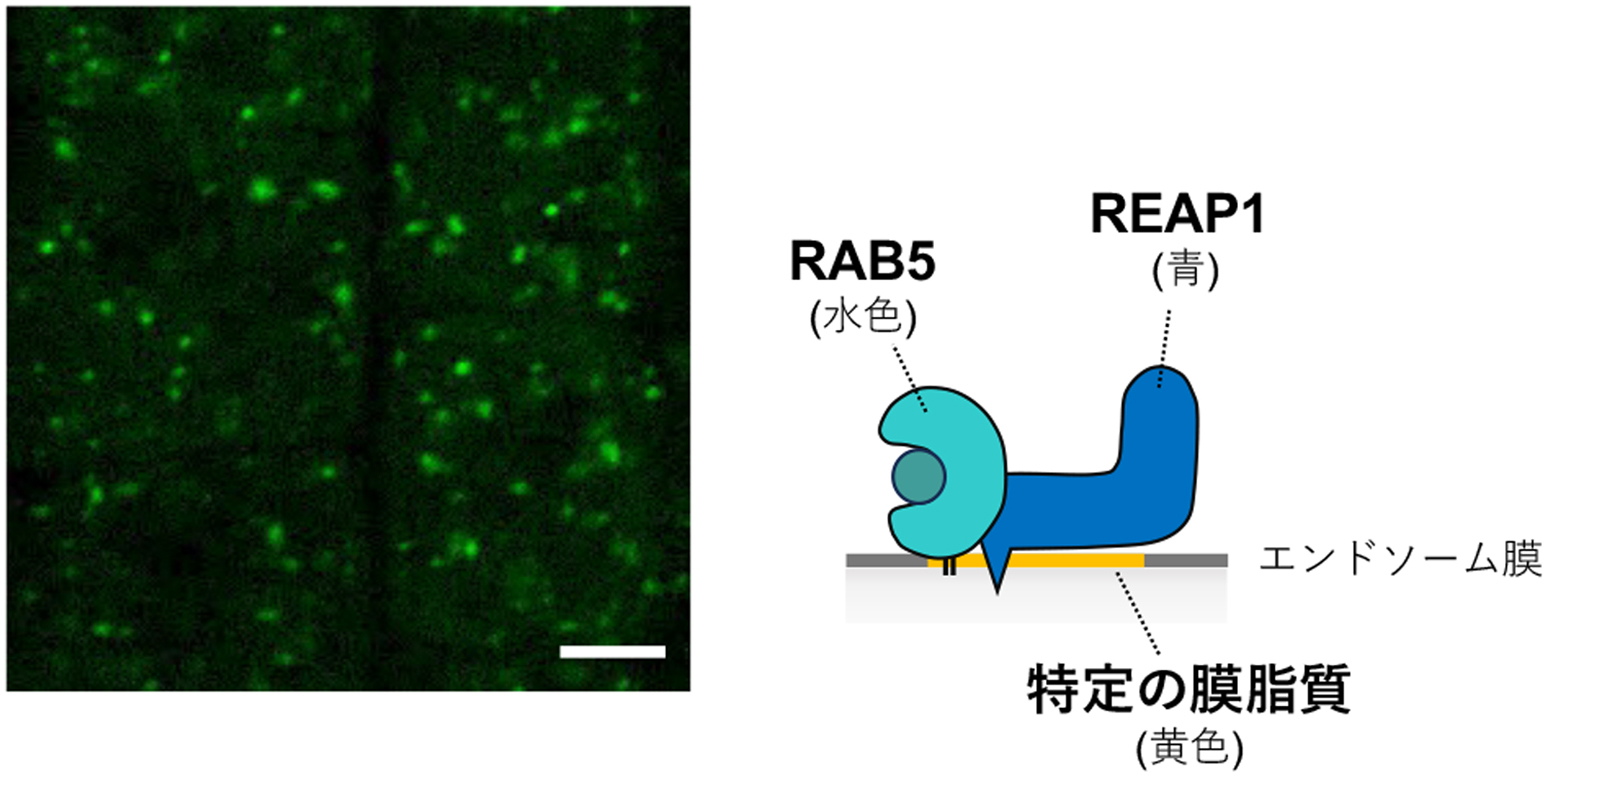 図2: REAP1はRAB5や膜脂質との結合を介してエンドソームに局在する:
共焦点レーザー顕微鏡で観察したREAP1の細胞内局在(左)とその局在機構の模式図(右)。左の図で、粒状に見える構造がエンドソーム。スケールバーは5 µm。
次に、REAP1がROP7とも結合することを見出しました。さらに、RAB5は通常は細胞膜に存在するROP7をエンドソームへ移動させますが、
REAP1を欠く変異体ではこの移動が起こらないことを明らかにしました。このことから、REAP1がRAB5からROP7へ情報を伝える「橋渡し役」としてはたらくことが示されました(図3)。
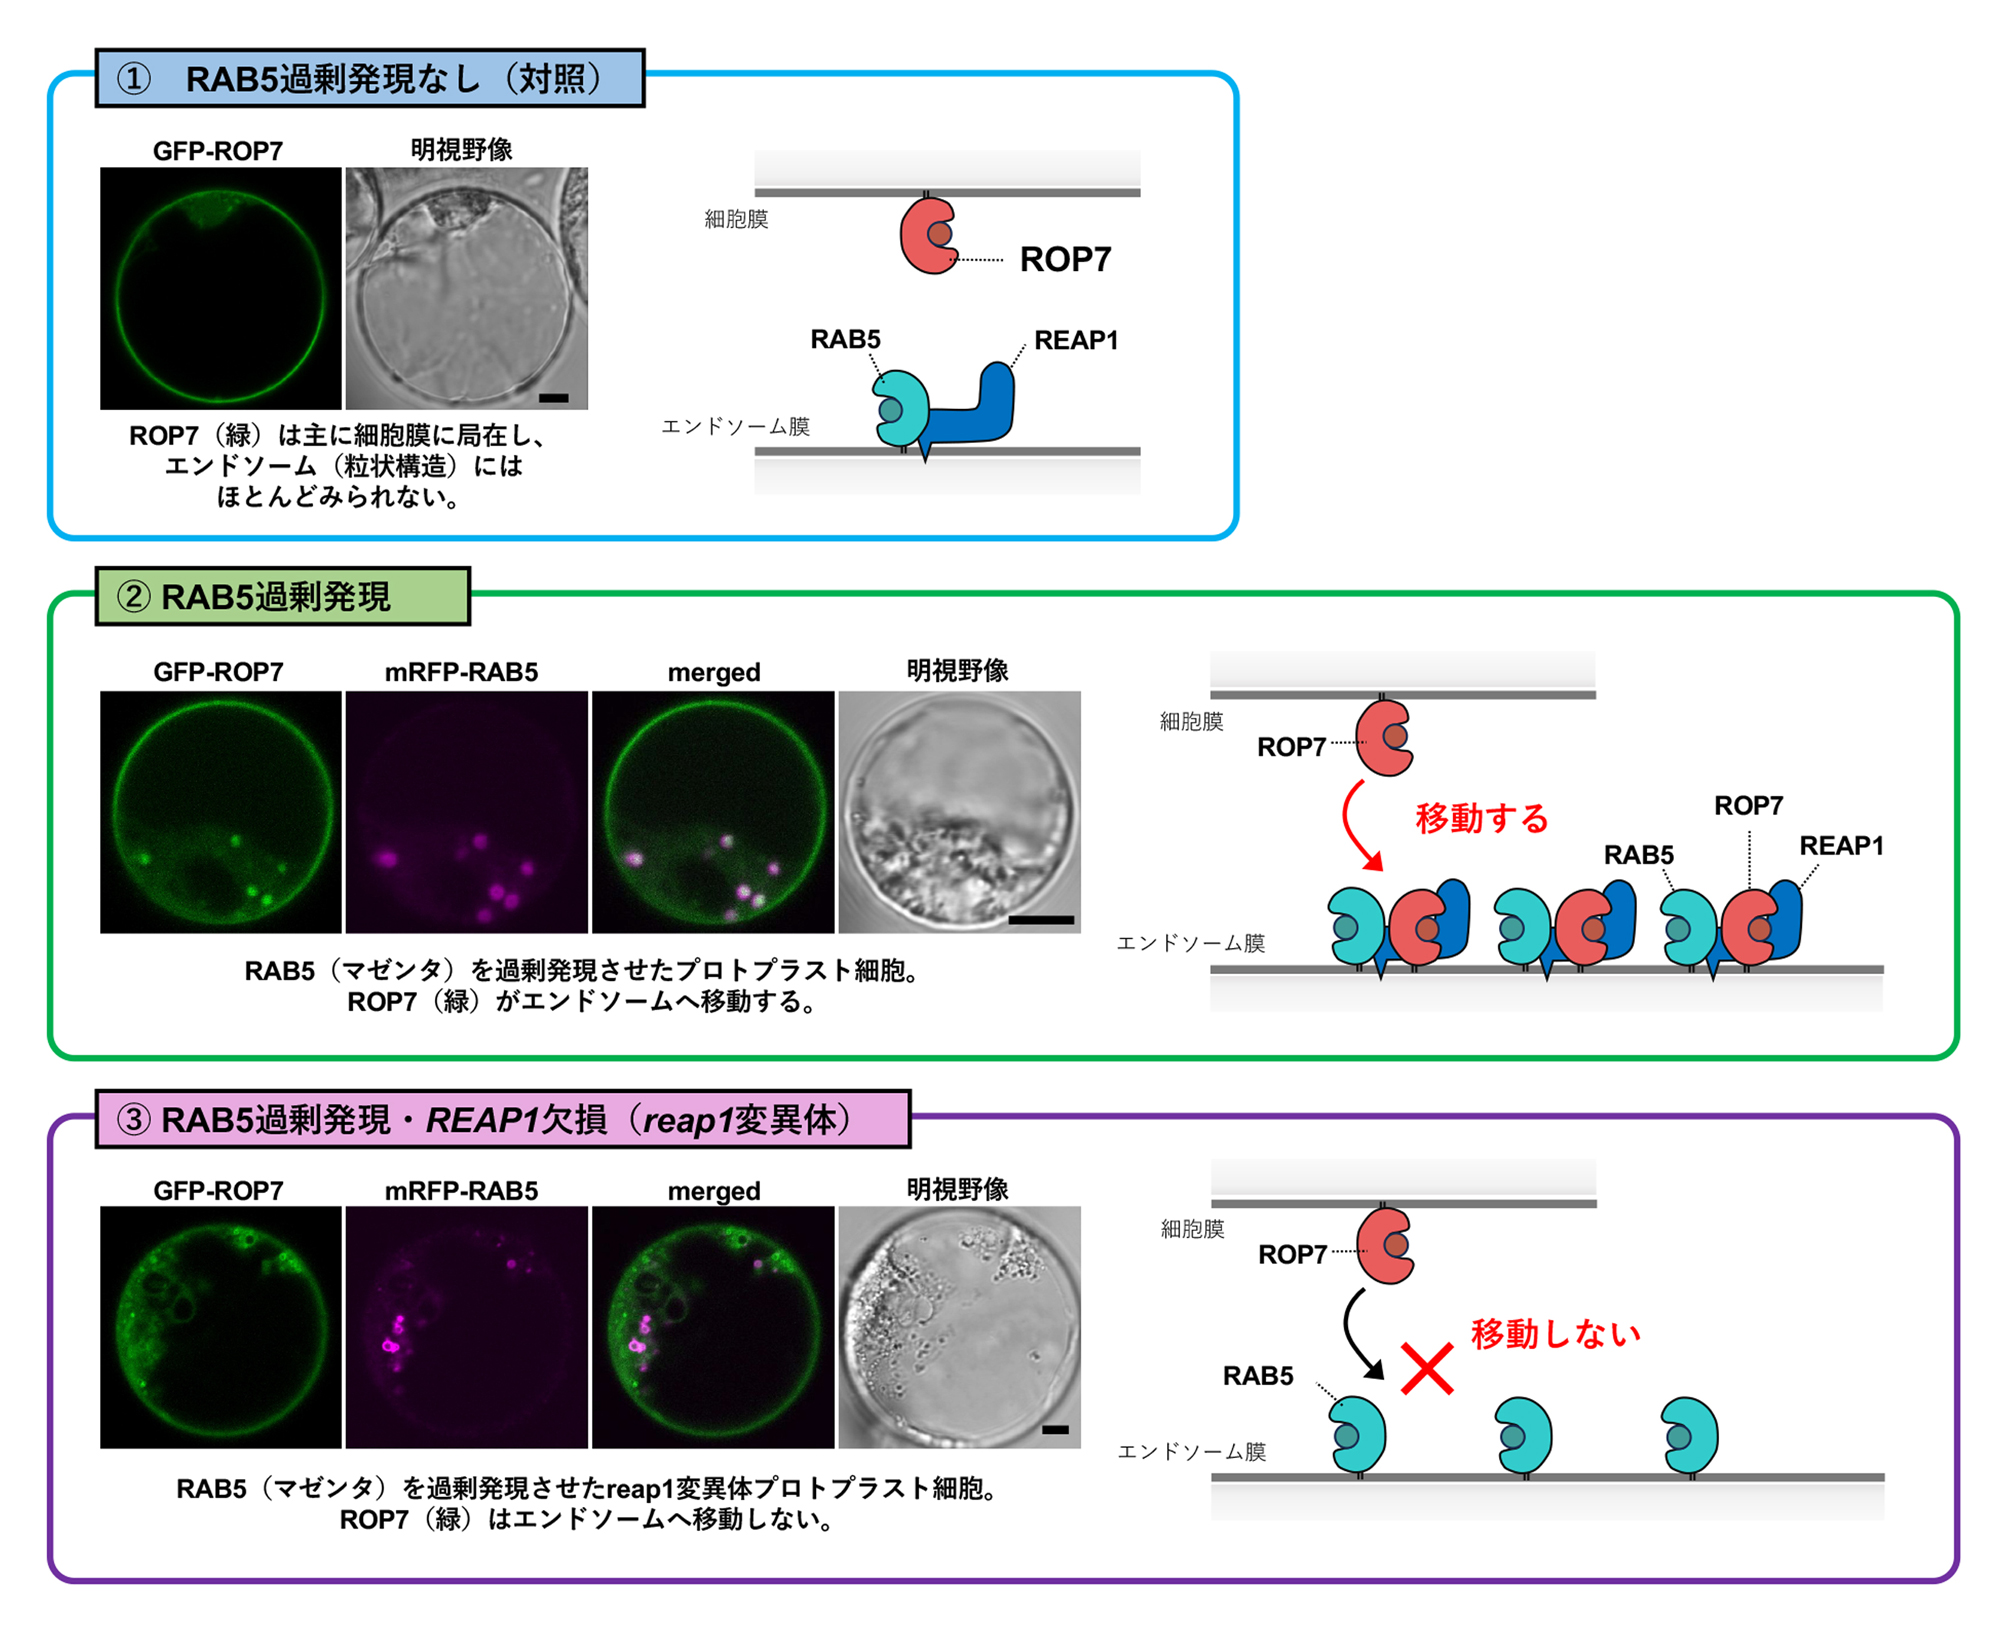 図3: RAB5はREAP1を介してROP7をエンドソームへ移動させる
:シロイヌナズナのプロトプラスと細胞でROP7の局在を観察した様子。ROP7は、通常、細胞膜に局在するが(上段)RAB5を増加させるとエンドソームに移動する(中段)。一方、REAP1を欠く細胞(
reap1変異体)では、RAB5を増加させてもこの移動はみられなかった(下段)。スケールバーは5 µm。
さらに、REAP1、RAB5、ROP7のはたらきを弱めた変異体を解析したところ、花粉の形成に異常を生じたことから、この分子ネットワークが正常な花粉形成に重要であることがわかりました。特に、RAB5とROP7の機能が同時に低下すると、花粉が一細胞期から二細胞期へ発達する過程
*4で異常が生じ、正常に成熟できない花粉が増加しました(図4)。
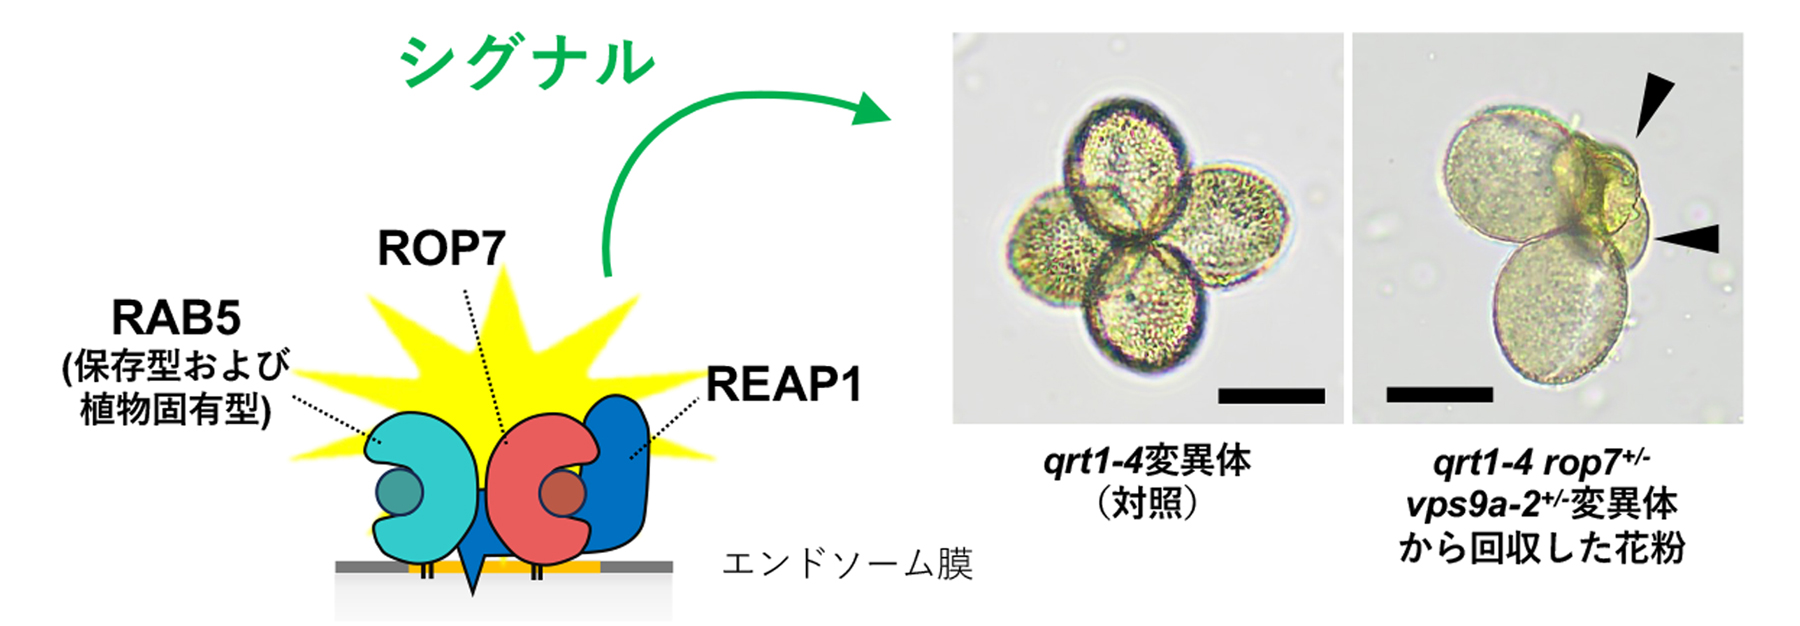 図4: RAB5-REAP1-ROP7分子ネットワークは正常な花粉形成を支える:
RAB5、REAP1、ROP7がはたらく分子ネットワークの模式図(左)。対照(
qrt1-4変異体)と比較し、ROP7とRAB5の活性が同時に低下した変異体(
qrt1-4 rop7+/- vps9a-2+/-変異体)では、約半分の花粉四分子に異常な花粉(矢尻)が観察された(右)。VPS9AはRAB5の活性化因子で、vps9a-2変異体ではRAB5の活性が低下している。スケールバーは20 µm。
これらの結果から、RAB5-REAP1-ROP7からなる情報伝達が植物の生殖を支える重要な役割を担うことが明らかになりました。本研究は、植物において異なる種類の低分子量GTPaseであるRAB5とROPが連携してはたらく分子機構を明らかにしたものです。
【今後の展望】
本研究により、異なる種類の低分子量GTPaseが連携してはたらく仕組みが植物に存在することが明らかになりました。植物は進化の過程で、動物とは異なる独自の低分子量GTPaseを多様化させてきました。今回の発見は、これら植物独自の分子が個別ではたらくだけでなく、互いに連携して情報伝達ネットワークを形成していることを示すものです。
今後はこのRAB5-REAP1-ROP経路が花粉形成以外の発生や環境応答でも機能するかを調べるとともに、エンドソーム上でREAP1やROP7がどのようなシグナルを制御しているのか、その詳細な分子機構の解明を進めます。これらの研究を通して、植物の生殖を支える仕組みへの理解を深めるとともに、異なる低分子量GTPaseが連携することが生物にどのような利点をもたらすのか、さらに、生物に共通する情報伝達の仕組みが植物の進化の過程でどのように多様化してきたのかを理解することにつながると期待されます。
【用語解説】
*1 低分子量GTPase
GTP(グアノシン三リン酸)を加水分解する酵素の一種。GTPが結合すると活性型となり、GTPがGDP(グアノシン二リン酸)に加水分解されるとタンパク質の構造が変化して不活性型となる。この2つの状態を切り替えることで細胞内のさまざまな反応を制御するため、「分子スイッチ」とも称される。低分子量GTPaseは分子量が比較的小さく、単量体としてはたらくことから、複数のサブユニットからなる三量体Gタンパク質とは区別される。
*2 ROP (Rho of Plants)
Rho GTPaseファミリーに属する低分子量GTPaseの一群で、植物が進化の過程で独自に発達させたグループ。細胞の形づくりをはじめとしたさまざまな生命現象を制御する。ROP7はそのメンバーのひとつで、細胞壁のパターン形成などに関わることが知られている。
*3 エンドソーム
膜で囲まれた細胞小器官のひとつ。タンパク質や膜脂質などを膜で囲まれた小胞などを介して細胞内のさまざまな場所へ運ぶ仕組みを「膜交通」という。エンドソームは、この膜交通において、交通網のハブ駅に相当する中継地点としてはたらく。運ばれてきたものを仕分けし、再利用、別の場所への輸送、あるいは分解など、それぞれの行き先へ送り出す。また、さまざまなタンパク質分子が集積することから、細胞内の情報伝達の場としても重要な役割をもつ。
*4 花粉が一細胞期から二細胞期へ発達する過程
植物では、生殖に伴う世代交代の過程で、染色体を1組もつ単相(n)の配偶体世代がつくられる。花粉形成では、まず、複相(2n)の花粉母細胞(小胞子母細胞ともいう)が減数分裂し、単相の小胞子(ミクロスポア)が形成される(一細胞期)。その後、小胞子は有糸分裂し、栄養細胞と雄原細胞からなる二細胞期へ移行する。さらに雄原細胞は有糸分裂して2つの精細胞となり、成熟した花粉が形成される。この過程は、花粉が成熟して正常な生殖機能を獲得するための重要な段階である。
【発表雑誌】
雑誌名: Nature Plants
掲載日: 2026年9月17日
論文タイトル: REAP1/AtSWAP70 integrates RAB5 and ROP signaling during sexual reproduction
著者: Emi Ito, Natalia Julia Rzepecka, Yoko Ito, Tomoko Hirano, Kazuo Ebine, Yoshihisa Oda, Masa H. Sato, Akihiko Nakano, Tomohiro Uemura, Takashi Ueda
DOI:
https://doi.org/10.1038/s41477-026-02368-8
【研究グループ】
本研究は、基礎生物学研究所 伊藤瑛海准教授(責任著者)、上田貴志教授(責任著者)、お茶の水女子大学 Natalia J. Rzepecka特任リサーチフェロー、伊藤容子講師、植村知博教授、京都府立大学 平野朋子准教授、佐藤雅彦教授、埼玉大学 海老根一生准教授、名古屋大学 小田祥久教授、理化学研究所光量子工学研究センター 中野明彦副センター長(研究当時/現 東京科学大学)が参加した共同研究チームにより実施されました。
【研究サポート】
本研究は、文部科学省科学研究費助成事業(19H05670, 19H05675, 26H00448, 26H00453)、科学技術振興機構(JST)戦略的創造研究推進事業ERATO(JPMJER2403)、同CREST(JPMJCR20E5)、日本学術振興会科学研究費助成事業(21H02515, 24K02050, 26K23209, 22K19327, 22H02643, 15K18527, 21K06210, 25K09673, JP24KJ1122)、武田科学振興財団、旭硝子財団、伊藤科学振興会、および自然科学研究機構生命創成探究センター(ExCELLS)特別共同研究プログラム(26-S2)の支援を受けて行われました。また、伊藤瑛海は日本学術振興会特別研究員(RPD)の支援を受けました。
【本研究に関するお問い合わせ先】
基礎生物学研究所 細胞動態研究部門
准教授 伊藤 瑛海(イトウ エミ)
TEL: 0564-55-7529
E-mail: itoemi@nibb.ac.jp
【報道担当】
基礎生物学研究所 広報室
TEL: 0564-55-7628
FAX: 0564-55-7597
E-mail: press@nibb.ac.jp
お茶の水大学 広報・ダイバーシティ推進課
京都府立大学事務局 企画・地域連携課
名古屋大学 総務部広報課